

男女共同参画学協会連絡会
支援企業による広告記事
- ソーラボジャパン株式会社
- CAD を使って光学装置を設計してみよう
- 「生物物理」2025年10月号
- ソーラボジャパン株式会社
- 次世代2光子顕微鏡―小型化がもたらす新たな可能性
- 「生物物理」2024年10月号
- ソーラボジャパン株式会社
- サイエンティフィックカメラと周辺機器の同期
- 「生物物理」2023年10月号
- ソーラボジャパン株式会社
- 顕微鏡のリノベーション ~ 顕微鏡ポートを活用した光学系の導入
- 「生物物理」2022年12月号
Home - 出版物
- 「生物物理」誌
- 「生物物理」誌(学会PDF版) 巻号リスト一覧
- 「生物物理」誌(学会PDF版) 目次・PDF file閲覧
- 最新刊は上記リンクより冊子(号)単位でのみダウンロードできます(エンバーゴ設定:公開方法変更)。
- 過去の刊行号は、冊子単位のほか、各記事ページから記事単位でのダウンロードも可能です。
- なお、下記の企業ロゴをクリックすると、本号の広告記事をご覧いただけます。


Vol. 66 No. 5(通巻387号)記事一覧
巻頭言
教育における言語の選択
石川 尚
解説
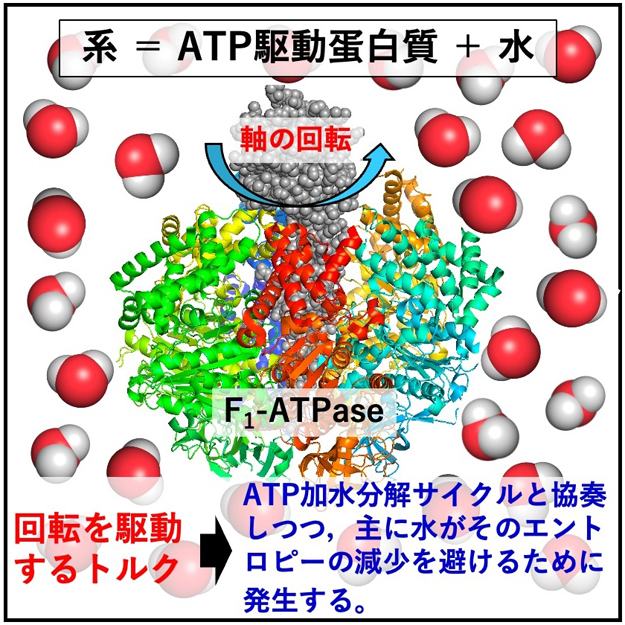
ATP駆動蛋白質の機能発現機構に関する統計熱
力学的考察
木下 正弘,安田 賢司,吉森 明,村田 武士
化学―力学共役の概念によると,ATP駆動蛋白質が力やトルクを発生させ,アクチンに沿うミオシンの一方向移動やF1-ATPase中における中心軸の一方向回転を実現することで,ATPの加水分解自由エネルギーを仕事に変換する.この概念における問題点を指摘し,実は水が中心的な役割を果たしていることを説明する.
総説
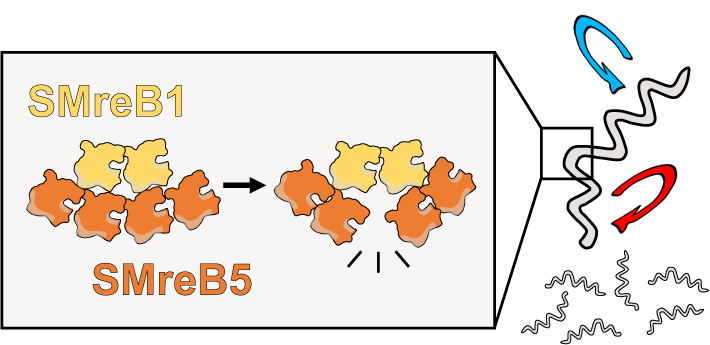
ユニークな運動を駆動する細菌アクチンMreBの分子特性
高橋 大地,宮田 真人,藤原 郁子
スピロプラズマは,5種類の細菌アクチンMreB(SMreB1-5)を組み合わせて特徴的な遊泳運動を行う.この運動は,地球上の生物の運動で最小の2つの因子数で実現され,発見されている中で唯一細菌の細胞骨格タンパク質で駆動される.本総説では,このユニークな運動に関わるSMreB の分子特性をまとめる.
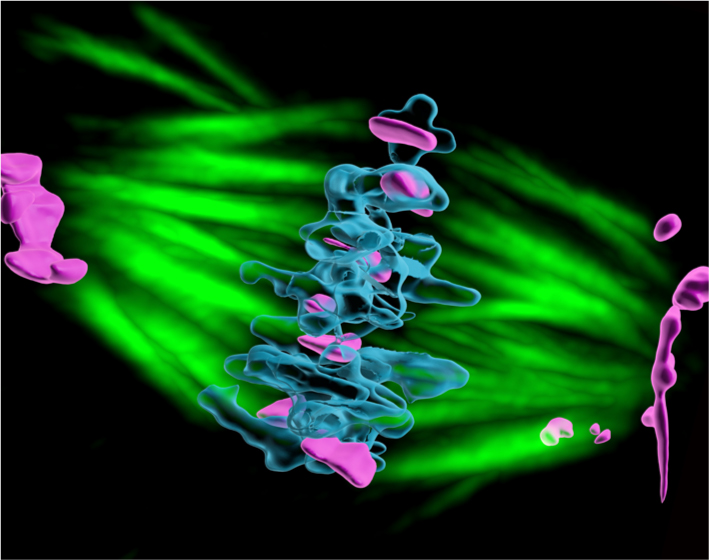
老化卵子の染色体数異常の原因を解明し抑止する
北島 智也
卵子の染色体数異常は卵母細胞における染色体分配エラーに起因し,加齢にともないエラー頻度が上昇する.老化マウスの卵母細胞のライブイメージング解析から,染色体が分配エラーに至るまでの時空間経路が明らかになった.さらに,それを人工動原体により操作することで卵子の染色体数異常が抑止できることが分かった.
トピックス
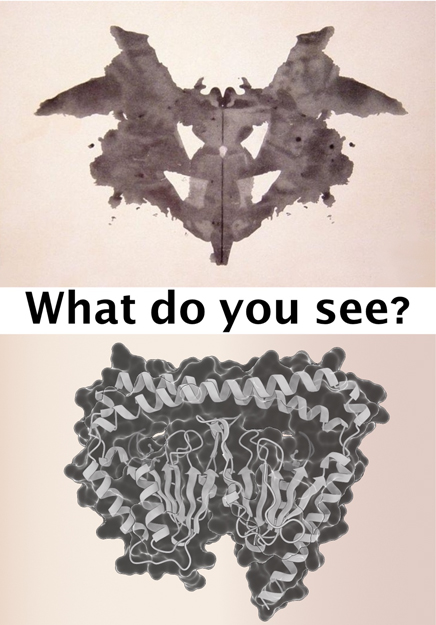
Structural Phenomicsに向けて:AFDBから新規タンパク質ファミリーを探す
佐久間 航也,太田 元規
立体構造の特徴を手がかりとしてAlphaFold Protein Structure Databaseから新規タンパク質ファミリー“Dual-wield NTPase”を発見した.この例をもとに,予測構造の洪水が構造生物学の役割,ひいては生物学研究の在り方をどう変えていくのか議論する.
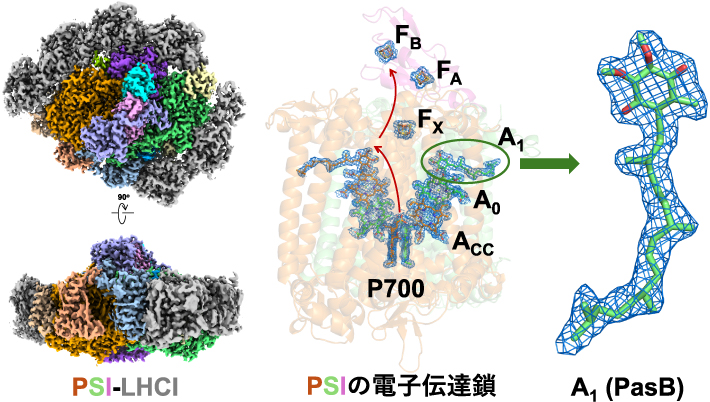
原始的な紅藻が持つ光化学系I集光性色素タンパク質超複合体の立体構造解析
加藤 公児,中島 芳樹,沈 建仁,長尾 遼
紅藻は緑藻や陸上植物とは異なる進化的系統に属し,特有の光捕集系を持つことが知られている.本稿では,原始紅藻由来の光化学系I―集光性色素タンパク質超複合体(PSI-LHCI)の立体構造に基づき,電子伝達分子の特異性,PSI-LHCIのLHCI結合部位と相互作用の進化的適応の特徴について紹介する.
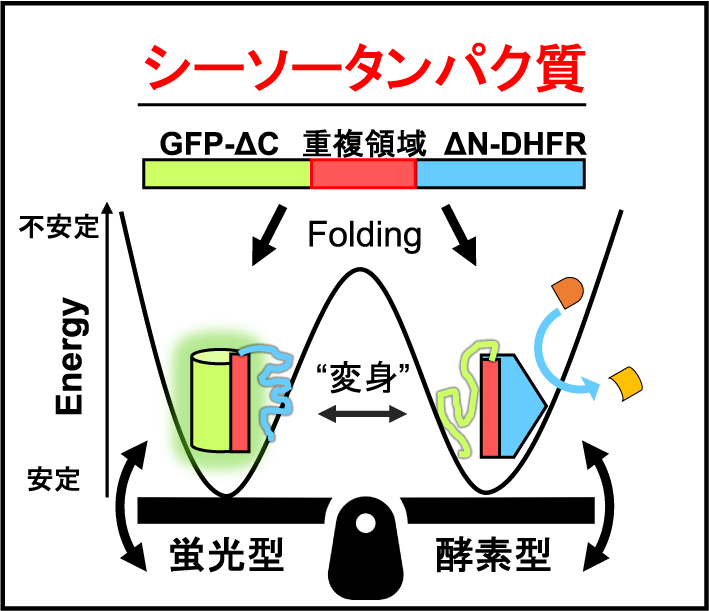
シーソータンパク質:蛍光型と酵素型で相互に切り替わるタンパク質の創製
池田 刀麻,野島 達也,田口 英樹
通常,タンパク質は1つの立体構造をもつ.しかし,自然界には相互に変換可能な複数の機能性構造をもつmetamorphic protein(変身タンパク質)が存在する.私たちは,蛍光型と酵素型の2つの構造を取りうる変身タンパク質(シーソータンパク質)を設計し,リガンドや溶液条件によってその立体構造変化を制御した.さらに,その立体構造の変化(変身)を高速原子間力顕微鏡で捉えた.
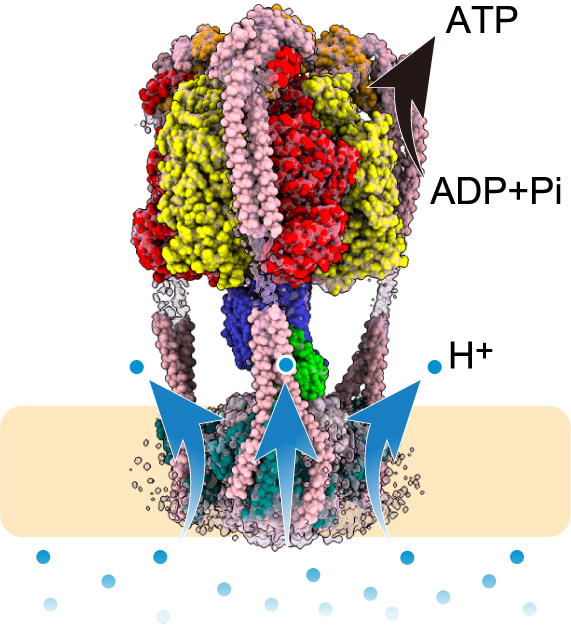
ATP合成酵素を改造してエネルギー変換のギア比を高める
上野 博史,野地 博行
私たちは自然とは異なる設計でATP合成酵素を改変し,そのエネルギー変換のギア比であるH+/ATP比を高めることで,従来不可能だった低いプロトン駆動力下でのATP合成を実現した.本稿では,その設計思想と構造・機能解析から見えてきたATP合成酵素の設計原理を概説する.
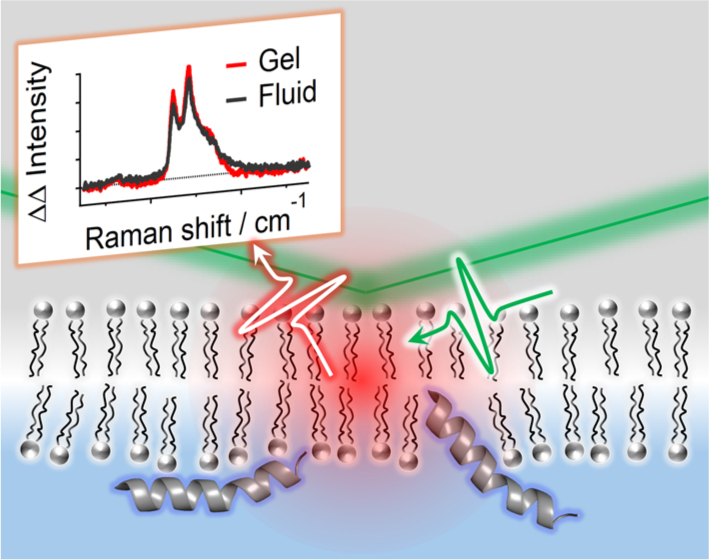
全反射ラマン分光法で観る脂質膜と膜結合ペプチドの相互作用
近藤 正人
ペプチドやタンパク質には膜と結合して機能を発揮するものがある.筆者らは,膜結合ペプチドと膜の相互作用を感度よく実測する手段として,固液界面のモデル脂質膜に界面敏感なラマン分光を適用する方法を新たに提案した.本稿では,その概要とアラメチシンという膜結合ペプチドに適用した例を紹介する.
ラボカラ
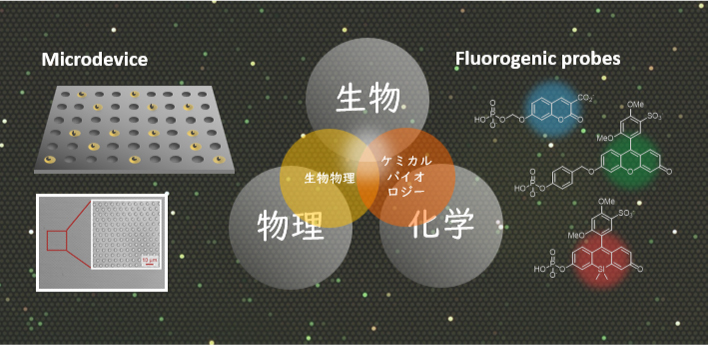
1分子レベルの酵素活性計測に基づく疾患診断技術の開発~異分野融合から社会実装へ~
小松 徹,渡邉 力也
談話室
ゲノム生物物理学サブグループの紹介
山本 哲也,寺川 剛
キャリアデザイン談話室(37):人生に無駄はない!
小島 清嗣
リレーエッセイ:シン・私が影響を受けた論文(15):実験とモデルのあいだで―論文の向こうにいる人たち
岡田 眞里子
支部だより ~北海道支部活動~
尾瀬 農之
若手の会だより ~「研究者としての核」を考え続ける~
越智 耀亮
海外だより ~私の幸福,ときどきバンクーバー(後編)~
谷内江 望
書評 微生物流体力学 生き物の動き・形・流れを探る
髙木 拓明
書評 揺らぎの中の遺伝情報 ソフトマターとしてのクロマチンと生命
新海 創也
編集後記
中根 大介(会誌編集委員)
- 最新刊は上記リンクより冊子(号)単位でのみダウンロードできます(エンバーゴ設定:公開方法変更)。
- 過去の刊行号は、冊子単位のほか、各記事ページから記事単位でのダウンロードも可能です。
- なお、下記の企業ロゴをクリックすると、本号の広告記事をご覧いただけます。